
Physiologie moléculaire du stress chez les plantes : de la perception du signal à l’expression des gènes et à la synthèse de métabolites de protection
Le stress chez les plantes n’est pas un simple état d’inhibition, mais une réponse physiologique extrêmement complexe, à plusieurs niveaux et rigoureusement coordonnée. Si, à l’échelle de l’organisme, on observe flétrissement, brûlures ou arrêt de la croissance, un véritable « drame biochimique » se joue au même moment aux niveaux cellulaire et moléculaire. Pour piloter efficacement la productivité des cultures dans des conditions défavorables, l’agronome doit comprendre quels gènes, enzymes, molécules de signalisation et hormones sont mobilisés. Cette connaissance permet de passer de l’observation passive des conséquences du stress à une intervention active, fondée sur des bases scientifiques.
Étape 1 : perception du signal et seconds messagers
Toute réponse au stress est précédée de la perception du stimulus, qu’il s’agisse de l’attaque d’un pathogène, de la sécheresse, de la chaleur ou de la salinité. Ce processus débute à la membrane cellulaire, où se trouvent des protéines réceptrices spécialisées. Elles « reconnaissent » le signal de stress et déclenchent une cascade d’événements intracellulaires.

Le calcium (Ca²⁺), second messager universel. L’une des réponses les plus précoces et les plus universelles de la cellule végétale à pratiquement tout stress abiotique ou biotique est une augmentation rapide et brusque de la concentration en ions calcium libres dans le cytosol. Le Ca²⁺ agit comme un second messager universel, impliqué dans les divers processus cellulaires qui conduisent aux réponses des plantes au stress. Cette augmentation résulte de l’ouverture des canaux calciques de la membrane et de l’entrée d’ions depuis l’apoplasme ou depuis les réserves intracellulaires (vacuole et réticulum endoplasmique).
Pour « décoder » ce signal calcique, la cellule dispose d’un véritable arsenal de protéines capteurs. Elles possèdent des sites de liaison du calcium spécifiques (motifs EF-hand) qui, lorsque le Ca²⁺ s’y fixe, changent de conformation et deviennent actives. Les principaux capteurs du calcium sont :
les calmodulines (CaM) et les protéines apparentées à la calmoduline (CML), qui activent de nombreuses cibles, dont des enzymes et des facteurs de transcription ;
les protéines kinases dépendantes du calcium (CDPK/CPK), capteurs-effecteurs clés qui phosphorylent (activent) directement les protéines cibles et transmettent le signal plus loin dans la chaîne ;
les protéines de type calcineurine B (CBL), qui interagissent avec des kinases spécialisées (CIPK) et forment un autre puissant système de signalisation.

Les espèces réactives de l’oxygène (ERO), à la fois signal et arme. Presque simultanément au pic de calcium, la cellule subit une « explosion oxydative » : une brusque augmentation de la concentration en espèces réactives de l’oxygène. Celles-ci comprennent l’anion superoxyde (O₂⁻), le peroxyde d’hydrogène (H₂O₂), l’oxygène singulet (¹O₂) et le radical hydroxyle (OH•). Les principaux producteurs d’ERO dans la cellule stressée sont des enzymes membranaires, les NADPH oxydases (RBOH), activées notamment par le signal calcique.
Pendant longtemps, les ERO ont été considérées exclusivement comme des agents toxiques provoquant des dommages oxydatifs aux lipides, aux protéines et à l’ADN. On a toutefois établi aujourd’hui leur rôle essentiel de signalisation. Le H₂O₂, en particulier, joue un rôle central dans les voies de signalisation, les réponses au stress et la régulation de la croissance. Les ERO servent de signaux précoces lors de nombreux stress abiotiques, en modifiant l’activité des enzymes et en régulant l’expression des gènes.
Gazotransmetteurs : NO et H₂S. Les signaux calcique et ERO sont complétés par l’action de molécules de signalisation gazeuses, parmi lesquelles les plus importantes sont le monoxyde d’azote (NO) et le sulfure d’hydrogène (H₂S). Ces molécules, produites de façon endogène, peuvent renforcer ou atténuer mutuellement leur action et interagir avec les voies de signalisation hormonales, en particulier celle de l’éthylène. Elles participent à la régulation de l’équilibre redox de la cellule et contrôlent l’activité d’enzymes spécifiques.
Étape 2 : transduction du signal — la cascade des MAPK
Le signal perçu doit être amplifié et transmis au noyau, où se trouvent les gènes. Cette fonction est assurée par l’une des voies de signalisation les plus conservées chez les eucaryotes : la cascade des MAP kinases (mitogen-activated protein kinase, protéines kinases activées par les mitogènes). C’est un mécanisme de signalisation universel, indispensable au développement, à la croissance et à la tolérance au stress des plantes.

La cascade est une succession de trois types de protéines kinases qui s’activent mutuellement par phosphorylation :
MAPKKK (MAP kinase kinase kinase) : la première de la chaîne, activée par des récepteurs ou des seconds messagers.
MAPKK (MAP kinase kinase) : phosphorylée par la MAPKKK, elle devient active.
MAPK (MAP kinase) : la kinase terminale de la cascade, qui phosphoryle de nombreuses protéines cibles, dont des facteurs de transcription dans le noyau.
Ainsi, par phosphorylation en cascade, la voie des MAPK amplifie progressivement les divers signaux de stress et les transmet aux facteurs de réponse en aval, déclenchant une série de réactions de stress.
Il est intéressant de noter que les génomes végétaux contiennent des dizaines, voire des centaines de gènes de la cascade des MAPK. Chez la canne à sucre, par exemple, 89 gènes MAPK, 24 gènes MAPKK et 107 gènes MAPKKK ont été identifiés. Cette diversité permet à la plante d’ajuster finement sa réponse aux différents types de stress : certains gènes sont activés par la sécheresse, d’autres par la salinité, d’autres encore par l’attaque de pathogènes.
Étape 3 : facteurs de transcription, les « chefs d’orchestre » de l’orchestre génétique
Lorsque le signal atteint le noyau, il doit « activer » ou « désactiver » certains gènes. Cette fonction revient aux facteurs de transcription (FT) : des protéines qui se fixent sur les régions régulatrices de l’ADN (éléments cis) et modulent l’activité des gènes. La régulation transcriptionnelle des gènes sensibles au stress est une étape décisive dans la mise en place des mécanismes de tolérance au stress.
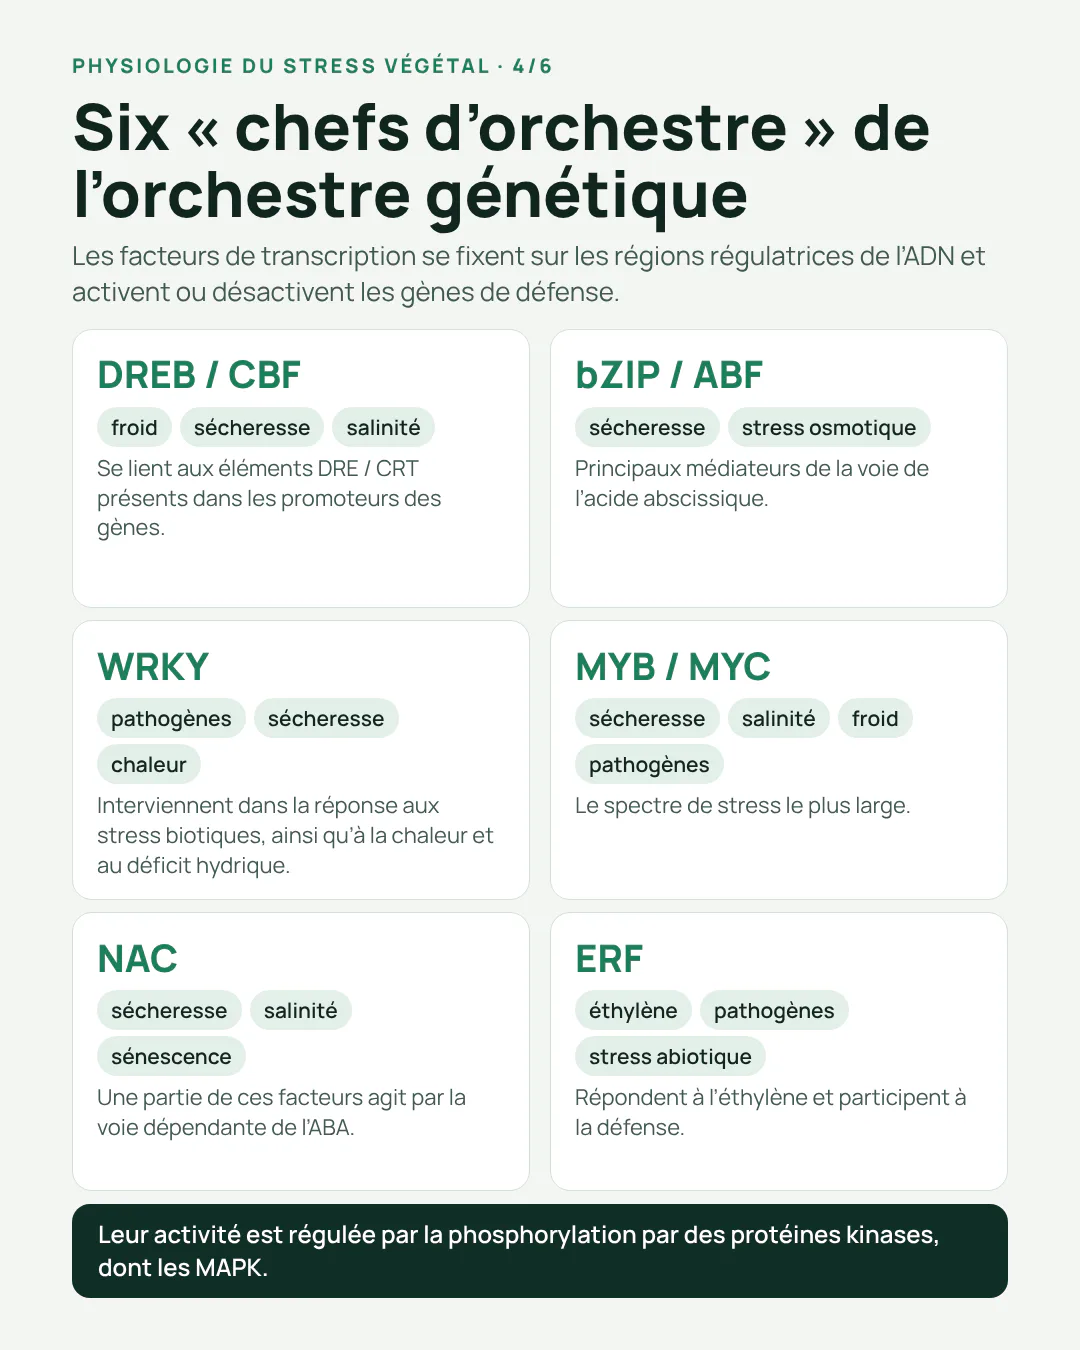
Six grandes familles de facteurs de transcription jouent un rôle clé dans la réponse des plantes au stress : DREB/CBF, bZIP/ABF, WRKY, MYB, NAC et ERF. De nombreux travaux ont identifié ces FT comme sensibles au stress, et ils peuvent constituer des cibles privilégiées pour l’amélioration des plantes cultivées.
Famille de FT Principales fonctions en situation de stress
DREB/CBF - Régulateurs clés de la réponse au froid, à la sécheresse et à la salinité. Se lient aux éléments DRE/CRT des promoteurs de gènes
bZIP/ABF - Principaux médiateurs de la voie de signalisation de l’acide abscissique (ABA) lors de la sécheresse et du stress osmotique
WRKY - Interviennent dans la réponse aux stress biotiques (pathogènes), ainsi qu’à la sécheresse et à la chaleur
MYB/MYC - Impliqués dans la réponse à la sécheresse, à la salinité, au froid et à l’attaque de pathogènes
NAC - Régulent la réponse à la sécheresse, à la salinité et à la sénescence ; certains facteurs NAC agissent par la voie dépendante de l’ABA
ERF - Répondent à l’éthylène et participent à la défense contre les pathogènes et les stress abiotiques
Un mécanisme essentiel de régulation de l’activité de ces facteurs de transcription est leur phosphorylation par des protéines kinases, dont les MAPK. C’est l’une des principales modifications post-traductionnelles, et elle joue un rôle critique dans la signalisation cellulaire et l’expression des gènes.
Étape 4 : régulation hormonale — un réseau de voies interconnectées
Parallèlement à la signalisation par les MAPK et à l’activation des facteurs de transcription, une réorganisation à grande échelle de l’équilibre hormonal s’opère dans la plante stressée. Les phytohormones agissent comme des régulateurs clés qui intègrent croissance et réponses au stress par des voies de signalisation complexes. Il est important de souligner que les différentes hormones n’agissent pas isolément, mais forment un réseau complexe d’interactions croisées, qui ajuste finement la réponse au type et à l’intensité précis du stress.

L’acide abscissique (ABA), principale hormone du stress abiotique. La synthèse d’ABA augmente fortement en cas de sécheresse, de salinité et de froid. Il déclenche la fermeture des stomates, réduisant ainsi les pertes d’eau, et active l’expression de nombreux gènes de défense. L’ABA est biosynthétisé dans les plastes à partir de caroténoïdes (violaxanthine). Les enzymes clés de cette voie comprennent la 9-cis-époxycaroténoïde dioxygénase (NCED), la xanthoxine déshydrogénase et l’aldéhyde abscissique oxydase.
L’acide jasmonique (AJ), hormone de la blessure et de la défense contre les insectes. Les jasmonates sont synthétisés par la voie des octadécanoïdes à partir de l’acide α-linolénique libéré des lipides membranaires lors d’une lésion des tissus. Les enzymes clés sont la lipoxygénase (LOX), l’allène oxyde synthase (AOS), l’allène oxyde cyclase (AOC) et la 12-oxophytodiénoate réductase 3 (OPR3), ainsi que les enzymes de la β-oxydation dans les peroxysomes.
L’acide salicylique (AS), hormone de la résistance systémique acquise. L’AS joue un rôle central dans la défense contre les pathogènes biotrophes et dans la mise en place de l’immunité systémique. Les plantes synthétisent l’AS par deux voies indépendantes : celle de l’isochorismate synthase (ICS) et celle de la phénylalanine ammonia-lyase (PAL).
L’éthylène, hormone gazeuse de la sénescence et du stress. L’éthylène est produit en réponse à de nombreux stress, et les recherches récentes le placent au premier plan comme régulateur clé de la croissance et du rendement en situation de stress abiotique. Sa biosynthèse fait intervenir deux enzymes clés : l’ACC synthase (ACS), qui convertit la S-adénosylméthionine en acide 1-aminocyclopropane-1-carboxylique (ACC), et l’ACC oxydase (ACO), qui oxyde l’ACC en éthylène.
Étape 5 : synthèse de protéines et de métabolites de protection
Le résultat final de l’activation des facteurs de transcription et de la réorganisation hormonale est la synthèse d’un large éventail de composés protecteurs, qui assurent directement la survie de la cellule.
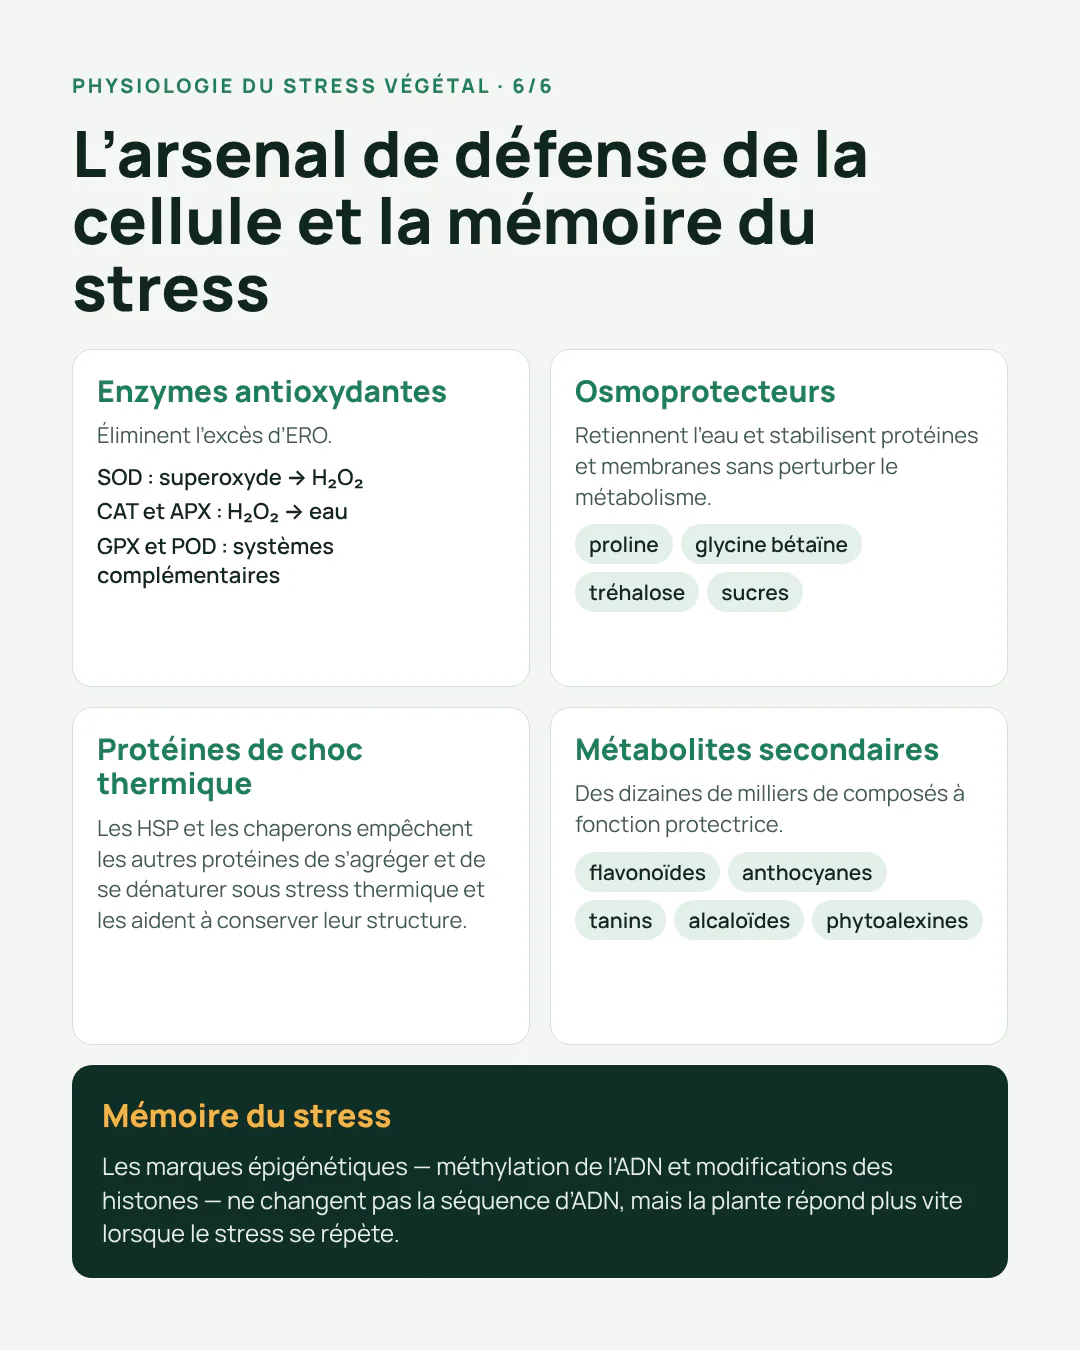
Enzymes antioxydantes. Pour neutraliser l’excès d’ERO, la cellule active un puissant système antioxydant. Ses enzymes clés comprennent la superoxyde dismutase (SOD), qui convertit le superoxyde en peroxyde d’hydrogène ; la catalase (CAT) et l’ascorbate peroxydase (APX), qui dégradent le H₂O₂ en eau ; ainsi que la glutathion peroxydase (GPX) et la peroxydase (POD).
Osmoprotecteurs. En cas de stress osmotique (sécheresse, salinité), les cellules accumulent des composés organiques de faible masse moléculaire qui stabilisent les protéines et les membranes sans perturber le métabolisme. Il s’agit notamment de la proline, de la glycine bétaïne, du tréhalose et des sucres solubles.
Protéines de choc thermique (HSP) et chaperons. En cas de stress thermique, la synthèse de protéines spécialisées est activée ; celles-ci empêchent l’agrégation et la dénaturation d’autres protéines et les aident à conserver leur structure native.
Métabolites secondaires. Aux niveaux cellulaire et subcellulaire, la réponse des plantes au stress met en jeu un ensemble de processus ramifiés, génétiques et moléculaires, qui aboutissent à la formation de dizaines de milliers de produits secondaires à fonction protectrice. Ils comprennent les flavonoïdes, les anthocyanes, les tanins, les alcaloïdes et les phytoalexines.
Étape 6 : régulation épigénétique et « mémoire du stress »
Les recherches actuelles montrent que les plantes sont capables de « mémoriser » un stress subi et de répondre plus rapidement à des expositions répétées. Ce phénomène, connu sous le nom de « mémoire du stress », repose sur des mécanismes épigénétiques qui ne modifient pas la séquence d’ADN. La méthylation de l’ADN et les modifications des histones sont les principales modifications épigénétiques susceptibles d’influencer le développement des plantes. La régulation épigénétique pourrait révolutionner l’amélioration des plantes et accroître les rendements grâce à la régulation de l’expression des gènes.
Conclusion
La physiologie du stress chez les plantes n’est pas un ensemble chaotique de dommages, mais un système de réponse hautement organisé et hiérarchisé. De la perception du signal par les capteurs de calcium et les ERO, en passant par les cascades de MAP kinases et l’activation des facteurs de transcription, jusqu’à la synthèse d’hormones et de métabolites protecteurs, chaque étape a été finement réglée par l’évolution pour maximiser les chances de survie. Comprendre ces mécanismes moléculaires ouvre de nouveaux horizons à l’agronomie moderne : de l’utilisation ciblée de produits antistress à l’obtention de variétés dotées d’une meilleure tolérance au stress.