
Fisiología molecular del estrés en las plantas: de la percepción de la señal a la expresión génica y la síntesis de metabolitos protectores
El estrés en las plantas no es simplemente un estado de inhibición, sino una respuesta fisiológica sumamente compleja, multinivel y estrictamente coordinada. Si a escala de organismo observamos marchitez, quemaduras o detención del crecimiento, a nivel celular y molecular se desarrolla en ese momento un auténtico «drama bioquímico». Para manejar con eficacia la productividad de los cultivos en condiciones adversas, el agrónomo necesita entender qué genes, enzimas, moléculas señal y hormonas intervienen. Este conocimiento permite pasar de la observación pasiva de las consecuencias del estrés a una intervención activa y con fundamento científico.
Etapa 1: percepción de la señal y segundos mensajeros
Toda respuesta al estrés va precedida de la percepción del estímulo, ya sea el ataque de un patógeno, la sequía, el calor o la salinidad. Este proceso comienza en la membrana celular, donde se localizan proteínas receptoras especializadas. Estas «reconocen» la señal de estrés y desencadenan una cascada de eventos intracelulares.

El calcio (Ca²⁺) como segundo mensajero universal. Una de las respuestas más tempranas y universales de la célula vegetal a prácticamente cualquier estrés abiótico o biótico es un aumento rápido y brusco de la concentración de iones de calcio libres en el citosol. El Ca²⁺ actúa como segundo mensajero universal, implicado en los diversos procesos celulares que conducen a las respuestas de las plantas al estrés. Este aumento se produce por la apertura de los canales de calcio de la membrana y la entrada de iones desde el apoplasto o desde los depósitos intracelulares (la vacuola y el retículo endoplasmático).
Para «descifrar» esta señal de calcio, la célula dispone de un auténtico arsenal de proteínas sensoras. Estas contienen sitios específicos de unión al calcio (motivos EF-hand) que, al unirse el Ca²⁺, cambian de conformación y se activan. Los principales sensores de calcio son:
Las calmodulinas (CaM) y las proteínas similares a la calmodulina (CML), que activan numerosas dianas, entre ellas enzimas y factores de transcripción.
Las proteínas quinasas dependientes de calcio (CDPK/CPK), sensores-efectores clave que fosforilan (activan) directamente las proteínas diana y transmiten la señal a lo largo de la cadena.
Las proteínas similares a la calcineurina B (CBL), que interactúan con quinasas especializadas (CIPK) y forman otro potente sistema de señalización.

Las especies reactivas de oxígeno (EROs) como señal y como arma. Casi simultáneamente al pico de calcio se produce en la célula un «estallido oxidativo»: un aumento brusco de la concentración de especies reactivas de oxígeno. Entre ellas figuran el anión superóxido (O₂⁻), el peróxido de hidrógeno (H₂O₂), el oxígeno singlete (¹O₂) y el radical hidroxilo (OH•). Los principales productores de EROs en la célula estresada son las enzimas NADPH oxidasas de membrana (RBOH), activadas, entre otros factores, por la señal de calcio.
Durante mucho tiempo las EROs se consideraron exclusivamente agentes tóxicos que causan daño oxidativo a lípidos, proteínas y ADN. Hoy, sin embargo, está establecido su papel esencial como señal. El H₂O₂, en particular, desempeña un papel central en las vías de señalización, en las respuestas al estrés y en la regulación del crecimiento. Las EROs actúan como señales tempranas ante muchos estreses abióticos, modificando la actividad de las enzimas y regulando la expresión génica.
Gasotransmisores: NO y H₂S. A las señales de calcio y de EROs se suma la acción de moléculas señal gaseosas, entre las que las más importantes son el óxido nítrico (NO) y el sulfuro de hidrógeno (H₂S). Estas moléculas, generadas de forma endógena, pueden potenciar o atenuar mutuamente su acción e interactuar con las vías de señalización hormonal, en particular con la del etileno. Participan en la regulación del equilibrio redox de la célula y controlan la actividad de enzimas específicas.
Etapa 2: transducción de la señal — la cascada de MAPK
La señal percibida debe amplificarse y transmitirse al núcleo, donde se encuentran los genes. De ello se encarga una de las vías de señalización más conservadas de los eucariotas: la cascada de MAP quinasas (proteínas quinasas activadas por mitógenos, del inglés mitogen-activated protein kinase). Es un mecanismo de señalización universal, imprescindible para el desarrollo, el crecimiento y la tolerancia al estrés de las plantas.

La cascada consiste en una secuencia de tres tipos de proteínas quinasas que se activan entre sí por fosforilación:
MAPKKK (MAP quinasa quinasa quinasa): la primera de la cadena, activada por receptores o por segundos mensajeros.
MAPKK (MAP quinasa quinasa): es fosforilada por la MAPKKK y se activa.
MAPK (MAP quinasa): la quinasa final de la cascada, que fosforila numerosas proteínas diana, entre ellas los factores de transcripción en el núcleo.
Así, mediante la fosforilación en cascada, la vía de las MAPK amplifica progresivamente las diversas señales de estrés y las transmite a los factores de respuesta situados aguas abajo, lo que desencadena una serie de respuestas al estrés.
Resulta interesante que los genomas vegetales contienen decenas e incluso cientos de genes de la cascada de MAPK. En la caña de azúcar, por ejemplo, se han identificado 89 genes MAPK, 24 genes MAPKK y 107 genes MAPKKK. Esta diversidad permite a la planta ajustar con precisión su respuesta a distintos tipos de estrés: unos genes se activan con la sequía, otros con la salinidad y otros ante el ataque de patógenos.
Etapa 3: factores de transcripción, los «directores» de la orquesta genética
Cuando la señal llega al núcleo, debe «activar» o «desactivar» determinados genes. Esta función corresponde a los factores de transcripción (FT): proteínas que se unen a regiones reguladoras del ADN (elementos cis) y modulan la actividad de los genes. La regulación transcripcional de los genes sensibles al estrés es un paso decisivo en el establecimiento de los mecanismos de tolerancia al estrés.
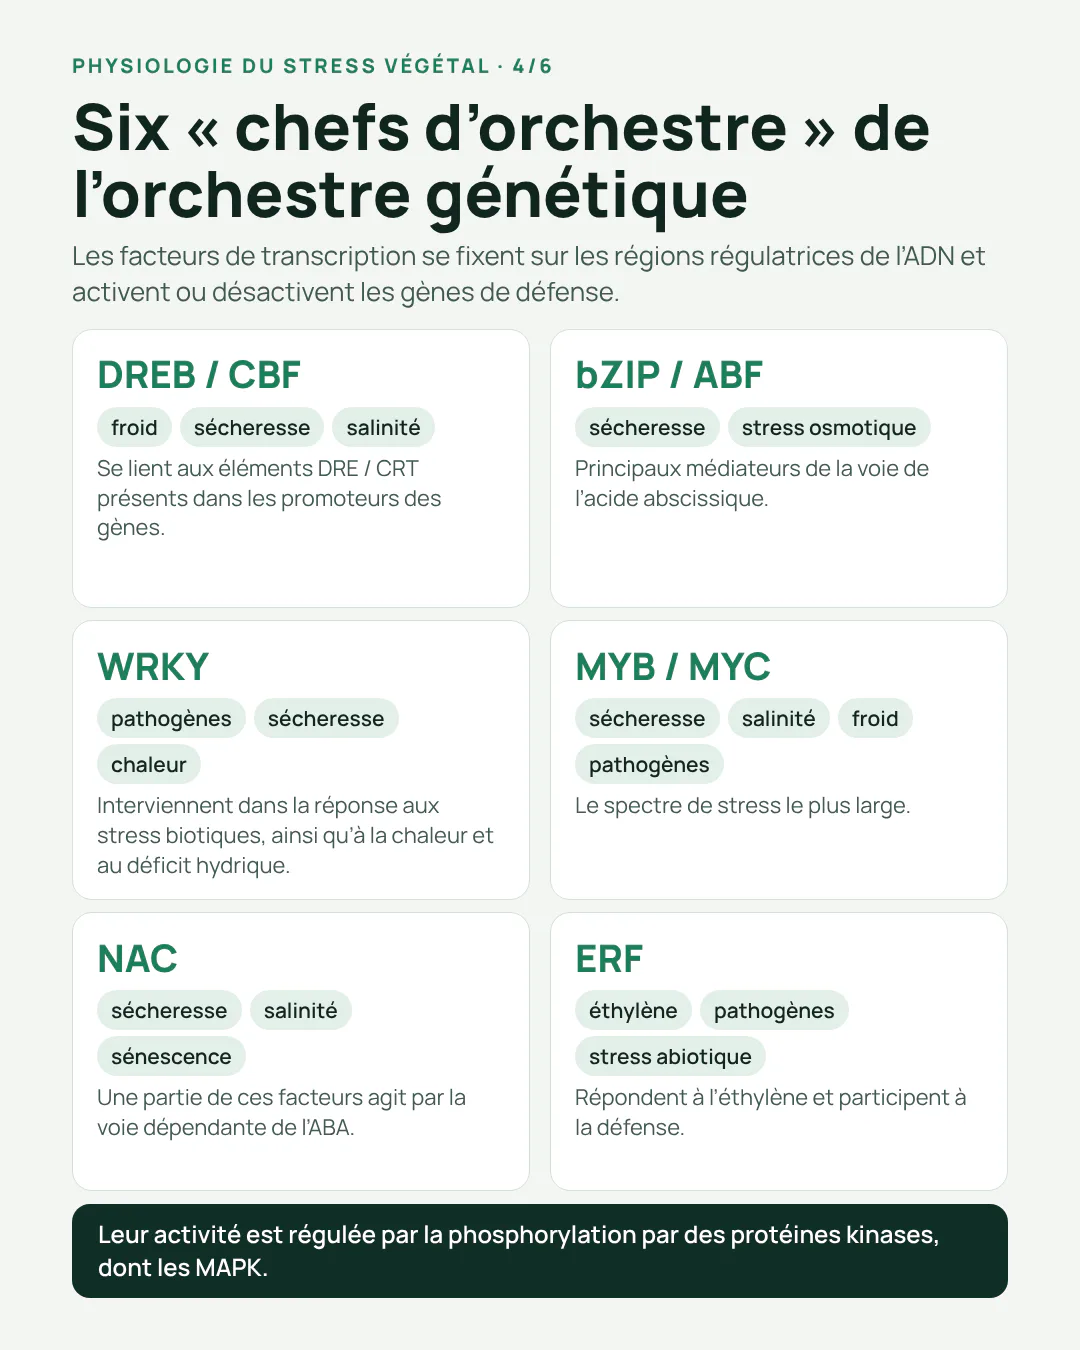
Seis familias principales de factores de transcripción desempeñan un papel clave en la respuesta de las plantas al estrés: DREB/CBF, bZIP/ABF, WRKY, MYB, NAC y ERF. Tras extensas investigaciones, estos FT han sido identificados como sensibles al estrés y pueden ser dianas principales para la mejora de los cultivos.
DREB/CBF - Reguladores clave de la respuesta al frío, la sequía y la salinidad. Se unen a los elementos DRE/CRT de los promotores génicos
bZIP/ABF - Principales mediadores de la vía de señalización del ácido abscísico (ABA) en la sequía y el estrés osmótico
WRKY - Participan en la respuesta a los estreses bióticos (patógenos), así como a la sequía y al calor
MYB/MYC - Implicados en la respuesta a la sequía, la salinidad, el frío y el ataque de patógenos
NAC - Regulan la respuesta a la sequía, la salinidad y la senescencia; algunos factores NAC actúan a través de la vía dependiente del ABA
ERF - Responden al etileno y participan en la defensa frente a patógenos y estreses abióticos
Un mecanismo fundamental para regular la actividad de estos factores de transcripción es su fosforilación por proteínas quinasas, entre ellas las MAPK. Es una de las principales modificaciones postraduccionales y desempeña un papel crítico en la señalización celular y en la expresión génica.
Etapa 4: regulación hormonal, una red de vías interconectadas
En paralelo a la señalización por MAPK y a la activación de los factores de transcripción, en la planta estresada tiene lugar una reorganización a gran escala del equilibrio hormonal. Las fitohormonas actúan como reguladores clave que integran el crecimiento y las respuestas al estrés a través de complejas vías de señalización. Es importante señalar que las distintas hormonas no actúan de forma aislada, sino que forman una compleja red de interacciones cruzadas que ajusta con precisión la respuesta al tipo y a la intensidad concretos del estrés.

El ácido abscísico (ABA), principal hormona del estrés abiótico. La síntesis de ABA aumenta bruscamente con la sequía, la salinidad y el frío. Desencadena el cierre de los estomas, lo que reduce la pérdida de agua, y activa la expresión de numerosos genes de defensa. El ABA se biosintetiza en los plastidios a partir de carotenoides (violaxantina). Entre las enzimas clave de esta vía figuran la 9-cis-epoxicarotenoide dioxigenasa (NCED), la xantoxina deshidrogenasa y la aldehído abscísico oxidasa.
El ácido jasmónico (AJ), hormona de la herida y de la defensa frente a insectos. Los jasmonatos se sintetizan por la vía de los octadecanoides a partir del ácido α-linolénico, liberado de los lípidos de membrana cuando se dañan los tejidos. Las enzimas clave son la lipoxigenasa (LOX), la aleno óxido sintasa (AOS), la aleno óxido ciclasa (AOC) y la 12-oxofitodienoato reductasa 3 (OPR3), además de las enzimas de la β-oxidación en los peroxisomas.
El ácido salicílico (AS), hormona de la resistencia sistémica adquirida. El AS desempeña un papel central en la defensa frente a patógenos biótrofos y en el establecimiento de la inmunidad sistémica. Las plantas sintetizan AS por dos vías independientes: la de la isocorismato sintasa (ICS) y la de la fenilalanina amoníaco-liasa (PAL).
El etileno, hormona gaseosa de la senescencia y del estrés. El etileno se produce en respuesta a numerosos estreses, y las investigaciones recientes lo sitúan en primer plano como regulador clave del crecimiento y del rendimiento bajo estrés abiótico. Su biosíntesis implica dos enzimas clave: la ACC sintasa (ACS), que convierte la S-adenosilmetionina en ácido 1-aminociclopropano-1-carboxílico (ACC), y la ACC oxidasa (ACO), que oxida el ACC a etileno.
Etapa 5: síntesis de proteínas y metabolitos protectores
El resultado final de la activación de los factores de transcripción y de la reorganización hormonal es la síntesis de un amplio espectro de compuestos protectores que garantizan directamente la supervivencia de la célula.
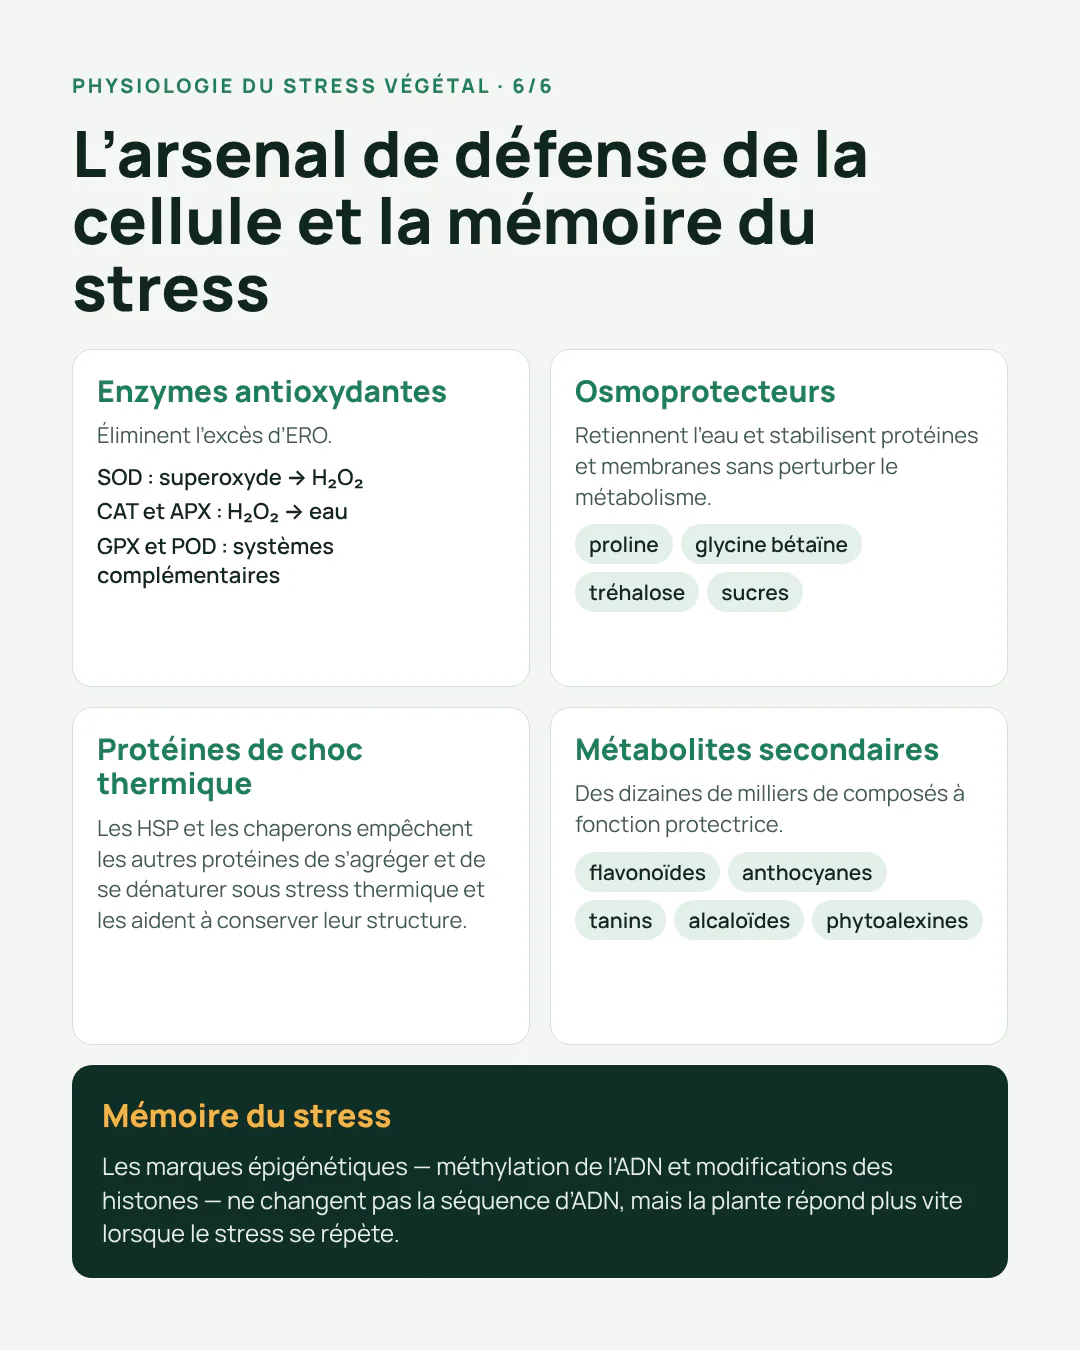
Enzimas antioxidantes. Para neutralizar el exceso de EROs, la célula activa un potente sistema antioxidante. Entre sus enzimas clave se cuentan la superóxido dismutasa (SOD), que convierte el superóxido en peróxido de hidrógeno; la catalasa (CAT) y la ascorbato peroxidasa (APX), que degradan el H₂O₂ hasta agua; así como la glutatión peroxidasa (GPX) y la peroxidasa (POD).
Osmoprotectores. Bajo estrés osmótico (sequía, salinidad), las células acumulan compuestos orgánicos de bajo peso molecular que estabilizan las proteínas y las membranas sin alterar el metabolismo. Entre ellos están la prolina, la glicina betaína, la trehalosa y los azúcares solubles.
Proteínas de choque térmico (HSP) y chaperonas. Bajo estrés térmico se activa la síntesis de proteínas especializadas que impiden la agregación y la desnaturalización de otras proteínas y les ayudan a conservar su estructura nativa.
Metabolitos secundarios. A nivel celular y subcelular, la respuesta de las plantas al estrés comprende un conjunto de procesos ramificados, genéticos y moleculares, que conducen a la formación de decenas de miles de productos secundarios con función protectora. Entre ellos se encuentran los flavonoides, las antocianinas, los taninos, los alcaloides y las fitoalexinas.
Etapa 6: regulación epigenética y «memoria del estrés»
Las investigaciones actuales muestran que las plantas son capaces de «recordar» el estrés vivido y de responder con mayor rapidez a exposiciones repetidas. Este fenómeno, conocido como «memoria del estrés», se basa en mecanismos epigenéticos que no alteran la secuencia del ADN. La metilación del ADN y las modificaciones de las histonas son las principales modificaciones epigenéticas que pueden influir en el desarrollo de las plantas. La regulación epigenética tiene el potencial de revolucionar el mejoramiento genético de las plantas y de aumentar el rendimiento mediante la regulación de la expresión génica.
Conclusión
La fisiología del estrés en las plantas no es un conjunto caótico de daños, sino un sistema de respuesta altamente organizado y jerárquico. Desde la percepción de la señal por los sensores de calcio y las EROs, pasando por las cascadas de MAP quinasas y la activación de los factores de transcripción, hasta la síntesis de hormonas y metabolitos protectores, cada etapa ha sido afinada por la evolución para maximizar las posibilidades de supervivencia. Comprender estos mecanismos moleculares abre nuevos horizontes a la agronomía moderna: desde la aplicación dirigida de productos antiestrés hasta la obtención de variedades con mayor tolerancia al estrés.