
Молекулярная физиология стресса у растений: от рецепции сигнала до экспрессии генов и синтеза защитных метаболитов
Стресс у растений — это не просто состояние угнетения, а сложнейший, многоуровневый и строго координированный физиологический ответ. Если на организменном уровне мы видим увядание, ожоги или остановку роста, то на клеточном и молекулярном уровнях в это время разворачивается настоящая «биохимическая драма». Чтобы эффективно управлять продуктивностью культур в неблагоприятных условиях, агроному важно понимать, какие гены, ферменты, сигнальные молекулы и гормоны задействованы в этом процессе. Это знание позволяет перейти от пассивного наблюдения за последствиями стресса к активному, научно обоснованному вмешательству.
Этап 1: Рецепция сигнала и вторичные посредники

Любой стресс-реакции предшествует восприятие раздражителя — будь то атака патогена, засуха, жара или засоление. Этот процесс начинается на клеточной мембране, где расположены специализированные белки-рецепторы. Они «узнают» стрессовый сигнал и запускают каскад внутриклеточных событий.
Кальций (Ca²⁺) как универсальный вторичный посредник. Одним из самых ранних и универсальных ответов растительной клетки практически на любой абиотический и биотический стресс является быстрое, скачкообразное повышение концентрации свободных ионов кальция в цитоплазме. Ca²⁺ служит универсальным вторичным посредником, вовлеченным в разнообразные клеточные процессы, ведущие к ответам растений на стрессы. Это происходит за счет открытия кальциевых каналов в мембране и поступления ионов из внеклеточного пространства или внутриклеточных депо (вакуоли, эндоплазматического ретикулума).
Для «расшифровки» этого кальциевого сигнала в клетке существует целый арсенал белков-сенсоров. Они содержат специальные кальций-связывающие участки (EF-hand мотивы), которые при присоединении Ca²⁺ изменяют свою конформацию и активируются. К главным кальциевым сенсорам относятся:

Кальмодулины (CaM) и кальмодулин-подобные белки (CML) — активируют множество мишеней, включая ферменты и транскрипционные факторы.
Кальций-зависимые протеинкиназы (CDPK/CPK) — ключевые сенсоры-эффекторы, которые непосредственно фосфорилируют (активируют) белки-мишени, передавая сигнал дальше по цепочке.
Кальциневрин-В-подобные белки (CBL) — взаимодействуют со специализированными киназами (CIPK), формируя еще одну мощную сигнальную систему.
Активные формы кислорода (АФК) как сигнал и оружие. Практически одновременно с кальциевым всплеском в клетке происходит «окислительный взрыв» — резкое увеличение концентрации активных форм кислорода. К ним относятся супероксид-анион (O₂⁻), перекись водорода (H₂O₂), синглетный кислород (¹O₂) и гидроксильный радикал (OH•). Основными производителями АФК в стрессированной клетке являются мембраносвязанные ферменты NADPH-оксидазы (RBOH), активируемые, в частности, кальциевым сигналом.
Долгое время АФК рассматривались исключительно как токсичные агенты, вызывающие окислительное повреждение липидов, белков и ДНК. Однако сегодня установлена их важнейшая сигнальная роль. H₂O₂, в частности, играет центральную роль в сигнальных путях, стрессовых ответах и регуляции роста. АФК служат ранними сигналами при действии многих абиотических стрессов, модифицируя активность ферментов и регулируя экспрессию генов.
Газотрансмиттеры: NO и H₂S. Кальциевый и АФК-сигналы дополняются действием газообразных сигнальных молекул, среди которых важнейшими являются оксид азота (NO) и сероводород (H₂S). Эти эндогенно генерируемые молекулы могут усиливать или ослаблять действие друг друга, а также взаимодействовать с гормональными сигнальными путями, в частности, с этиленом. Они участвуют в регуляции окислительно-восстановительного баланса клетки и контролируют активность специфических ферментов.
Этап 2: Трансдукция сигнала — MAPK-киназный каскад

Воспринятый сигнал должен быть усилен и передан в ядро, где находятся гены. Эту функцию выполняет один из самых консервативных сигнальных путей эукариот — MAP-киназный каскад (mitogen-activated protein kinase cascade). Это универсальный сигнальный механизм, необходимый для развития, роста и стрессоустойчивости растений.
Каскад представляет собой последовательность из трех типов протеинкиназ, которые активируют друг друга путем фосфорилирования:
MAPKKK (MAP kinase kinase kinase) — первая в цепочке, активируется рецепторами или вторичными посредниками.
MAPKK (MAP kinase kinase) — фосфорилируется MAPKKK и активируется.
MAPK (MAP kinase) — конечная киназа каскада, которая фосфорилирует множество белков-мишеней, включая транскрипционные факторы в ядре.
Таким образом, через каскадное фосфорилирование MAPK-путь прогрессивно усиливает и передает разнообразные стрессовые сигналы к нижестоящим факторам ответа, вызывая серию стрессовых реакций.
Интересно, что в растительных геномах присутствуют десятки и даже сотни генов MAPK-каскада. Например, у сахарного тростника идентифицировано 89 генов MAPK, 24 MAPKK и 107 MAPKKK. Такое разнообразие позволяет растению тонко настраивать ответ на разные типы стресса: одни гены активируются при засухе, другие — при засолении, третьи — при атаке патогенов.
Этап 3: Транскрипционные факторы — «дирижеры» генетического оркестра
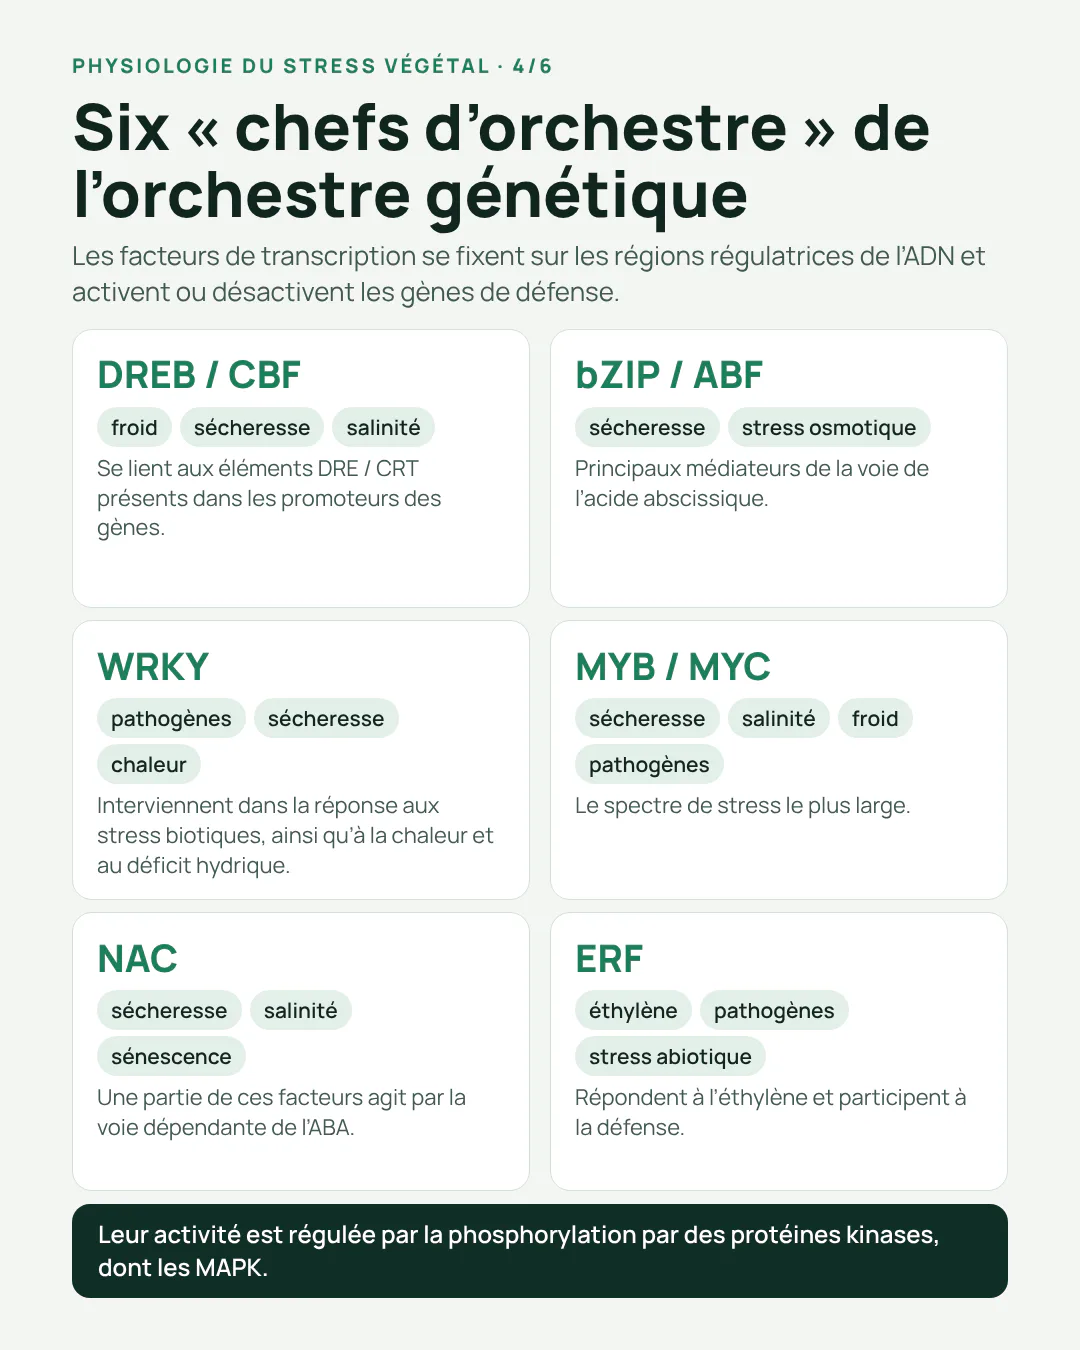
Когда сигнал достигает ядра, он должен «включить» или «выключить» определенные гены. Эту функцию выполняют транскрипционные факторы (ТФ) — белки, которые связываются с регуляторными участками ДНК (цис-элементами) и модулируют активность генов. Транскрипционная регуляция стресс-чувствительных генов является решающим шагом в установлении механизмов стрессоустойчивости.
Шесть основных семейств транскрипционных факторов играют ключевую роль в стресс-ответе растений: DREB/CBF, bZIP/ABF, WRKY, MYB, NAC и ERF. Эти ТФ были идентифицированы после обширных исследований как стресс-чувствительные, и они могут быть главными целями для улучшения сельскохозяйственных культур.
DREB/CBF - Ключевые регуляторы ответа на холод, засуху и засоление. Связываются с DRE/CRT элементами в промоторах генов
bZIP/ABF - Основные медиаторы сигнального пути абсцизовой кислоты (АБК) при засухе и осмотическом стрессе
WRKY - Участвуют в ответе на биотические стрессы (патогены), а также на засуху и тепло
MYB/MYC - Вовлечены в ответ на засуху, засоление, холод и атаку патогенов
NAC - Регулируют ответ на засуху, засоление и старение; некоторые NAC-факторы действуют через АБК-зависимый путь
ERF - Отвечают на этилен и участвуют в защите от патогенов и абиотических стрессов
Важнейшим механизмом регуляции активности этих транскрипционных факторов является их фосфорилирование протеинкиназами, включая MAPK. Это одна из ключевых посттрансляционных модификаций, играющая критическую роль в клеточной сигнализации и экспрессии генов.
Этап 4: Гормональная регуляция — сеть взаимосвязанных путей

Параллельно с MAPK-сигналингом и активацией транскрипционных факторов в стрессированном растении происходит масштабная перестройка гормонального баланса. Фитогормоны действуют как ключевые регуляторы, интегрирующие рост и стрессовые ответы через сложные сигнальные пути. Важно, что разные гормоны не действуют изолированно, а формируют сложную сеть перекрестных взаимодействий, обеспечивая тонкую настройку ответа на конкретный тип и силу стресса.
Абсцизовая кислота (АБК) — главный гормон абиотического стресса. Синтез АБК резко возрастает при засухе, засолении и холоде. Она запускает закрытие устьиц, снижая потерю воды, и активирует экспрессию множества защитных генов. Биосинтез АБК происходит из каротиноидов (виолаксантина) в пластидах. Ключевые ферменты этого пути включают 9-цис-эпоксикаротиноид-диоксигеназу (NCED), ксантоксин-дегидрогеназу и абсциз-альдегид-оксидазу.
Жасмоновая кислота (ЖАК) — гормон ранения и защиты от насекомых. Жасмонаты синтезируются через октадеканоидный путь из α-линоленовой кислоты, высвобождаемой из мембранных липидов при повреждении тканей. Ключевые ферменты: липоксигеназа (LOX), алленоксидсинтаза (AOS), алленоксидциклаза (AOC) и 12-оксо-фитодиеноат-редуктаза (OPR3), а также ферменты β-окисления в пероксисомах.
Салициловая кислота (СК) — гормон системной приобретенной устойчивости. СК играет центральную роль в защите от биотрофных патогенов и установлении системного иммунитета. Растения синтезируют СК двумя независимыми путями: изохоризмат-синтазным (ICS) и фенилаланин-аммиак-лиазным (PAL).
Этилен — газообразный гормон старения и стресса. Этилен производится в ответ на многочисленные стрессы, а недавние исследования выдвигают его на первый план как ключевой регулятор роста и урожайности при абиотическом стрессе. Биосинтез этилена включает два ключевых фермента: АСС-синтазу (ACS), превращающую S-аденозилметионин в 1-аминоциклопропан-1-карбоновую кислоту (АЦК), и АЦК-оксидазу (ACO), окисляющую АЦК до этилена.
Этап 5: Синтез защитных белков и метаболитов
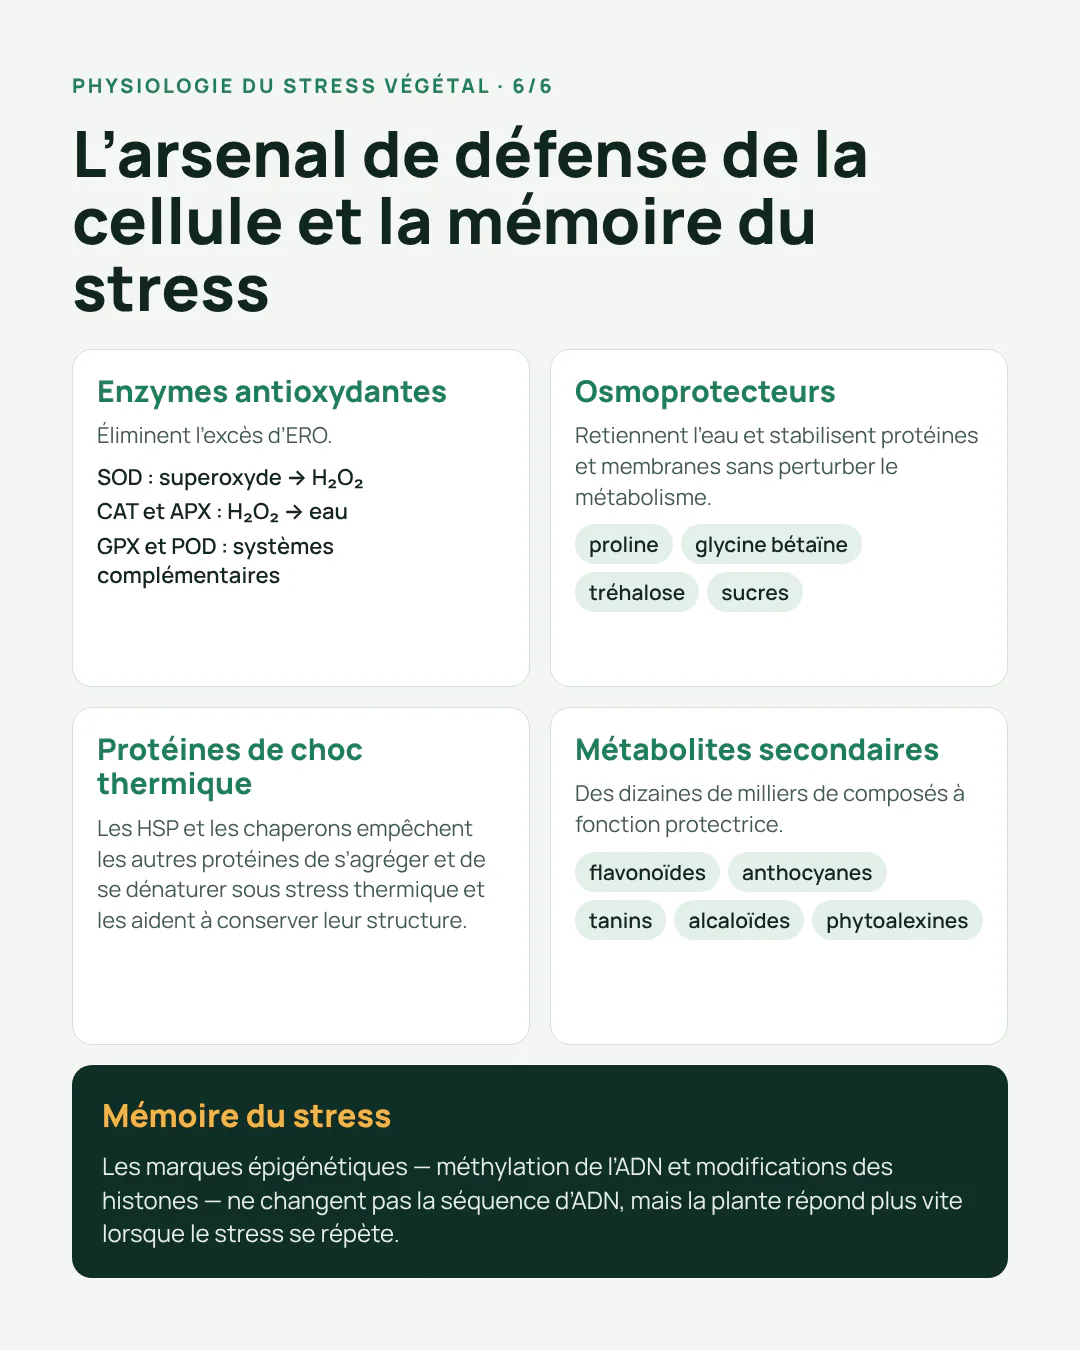
Конечным результатом активации транскрипционных факторов и гормональной перестройки является синтез широкого спектра защитных соединений, которые непосредственно обеспечивают выживание клетки.
Антиоксидантные ферменты. Для нейтрализации избытка АФК клетка активирует мощную антиоксидантную систему. Ключевые ферменты этой системы включают супероксиддисмутазу (SOD), превращающую супероксид в перекись водорода; каталазу (CAT) и аскорбатпероксидазу (APX), разлагающие H₂O₂ до воды; а также глутатионпероксидазу (GPX) и пероксидазу (POD).
Осмопротекторы. При осмотическом стрессе (засуха, засоление) клетки накапливают низкомолекулярные органические соединения, которые стабилизируют белки и мембраны, не нарушая метаболизм. К ним относятся пролин, глицин-бетаин, трегалоза и растворимые сахара.
Белки теплового шока (HSP) и шапероны. При температурном стрессе активируется синтез специализированных белков, которые предотвращают агрегацию и денатурацию других белков, помогают им сохранять нативную структуру.
Вторичные метаболиты. На клеточном и субклеточном уровне стресс-реакция растений включает комплекс разветвленных процессов на генетическом и молекулярном уровне, ведущих к образованию десятков тысяч вторичных продуктов, выполняющих протекторную функцию. К ним относятся флавоноиды, антоцианы, танины, алкалоиды и фитоалексины.
Этап 6: Эпигенетическая регуляция и «память о стрессе»
Современные исследования показывают, что растения способны «запоминать» пережитый стресс и быстрее реагировать на повторные воздействия. Этот феномен, известный как «стрессовая память», реализуется через эпигенетические механизмы, не затрагивающие последовательность ДНК. Метилирование ДНК и модификации гистонов являются ключевыми эпигенетическими модификациями, которые могут влиять на развитие растений. Эпигенетическая регуляция потенциально способна революционизировать селекцию растений и повысить урожайность за счет регуляции экспрессии генов.
Заключение
Физиология стресса у растений — это не хаотичный набор повреждений, а высокоорганизованная, иерархическая система ответа. От восприятия сигнала кальциевыми сенсорами и АФК, через каскады MAP-киназ и активацию транскрипционных факторов, до синтеза гормонов и защитных метаболитов — каждый этап тонко отрегулирован эволюцией для максимизации шансов на выживание. Понимание этих молекулярных механизмов открывает перед современной агрономией новые горизонты: от целенаправленного применения антистрессовых препаратов до создания сортов с улучшенной стрессоустойчивостью.